Sezione 2 · Ciclo Follicolare e Pathway Molecolari
La via Wnt/β-catenina nell’induzione e nel mantenimento dell’anagen: dalla nicchia staminale alla chirurgia FUE
1.Abstract clinico ed executive summary
La via Wnt/β-catenina è il segnale centrale che decide se un follicolo pilifero cresce. È necessaria per formare il follicolo nell’embrione, per avviare ogni nuovo anagen a partire dalle cellule staminali e per mantenere la crescita fino al catagen. In assenza di β-catenina nell’epidermide, le cellule staminali non producono più follicoli e il pelo si perde dopo il primo ciclo2. La stessa via agisce nella papilla dermica, dove mantiene la capacità di indurre la crescita del follicolo3,4.
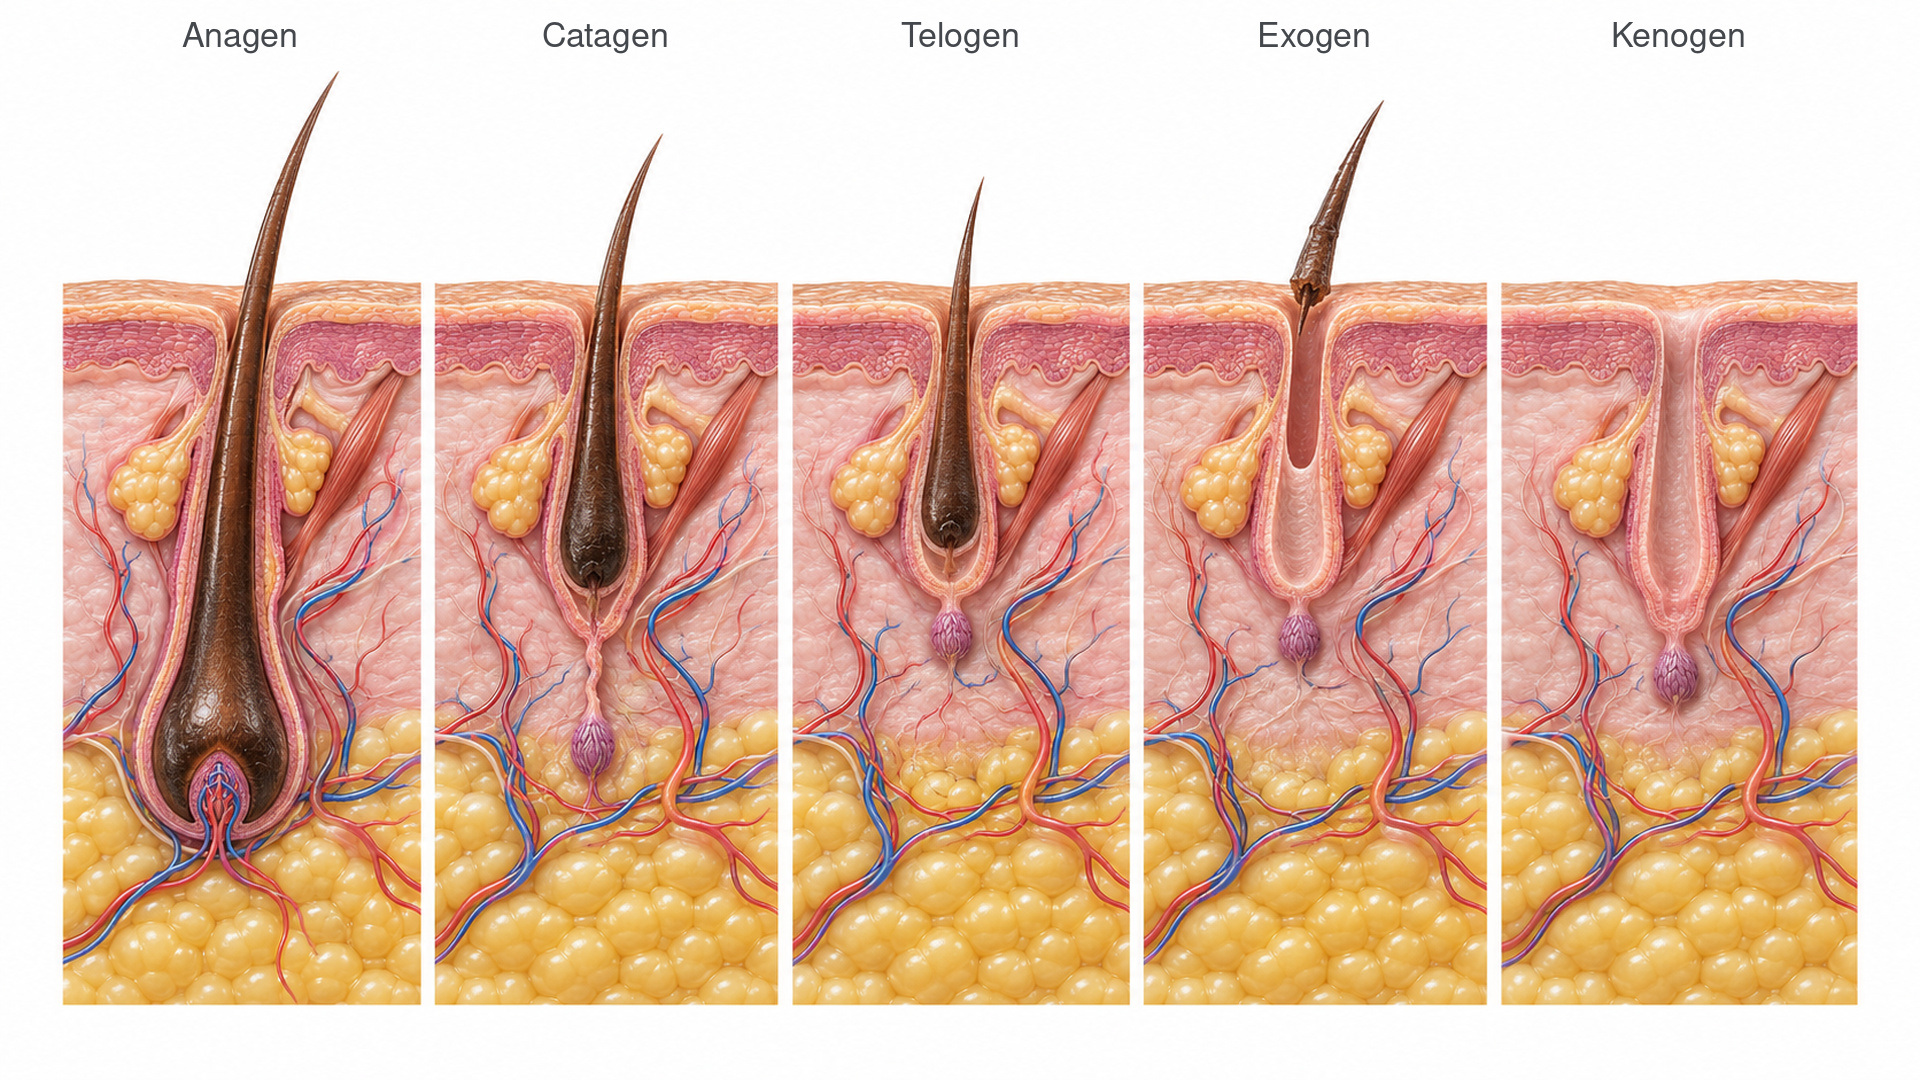
Per il clinico la via Wnt è rilevante per tre motivi. Spiega una parte del meccanismo con cui gli androgeni miniaturizzano il follicolo nell’alopecia androgenetica7,8. Chiarisce perché l’integrità della papilla dermica e del bulge è decisiva per la crescita del graft. Ed è il bersaglio di molte terapie in sviluppo, con un problema di sicurezza preciso: un’attivazione eccessiva e incontrollata della β-catenina è associata a tumori del follicolo10. Il quadro generale del ciclo follicolare è descritto nell’articolo pillar 02.01.
- L’attivazione delle cellule staminali all’inizio dell’anagen avviene in due tempi: prima il germe secondario, poi il bulge5.
- La β-catenina nella papilla dermica è necessaria per tutta la durata dell’anagen; se viene inattivata, la proliferazione della matrice crolla e il follicolo entra precocemente in catagen4.
- Nelle papille dermiche del cuoio capelluto calvo il DHT induce DKK-1, un inibitore della via Wnt7.
- Il blocco dell’inibitore SFRP1 ha aumentato la crescita di follicoli umani in coltura, aprendo una strategia che amplifica solo i segnali Wnt già presenti9.
2.Anatomia microscopica e ultrastrutturale: dove agisce la via Wnt
Il bulge e il germe secondario
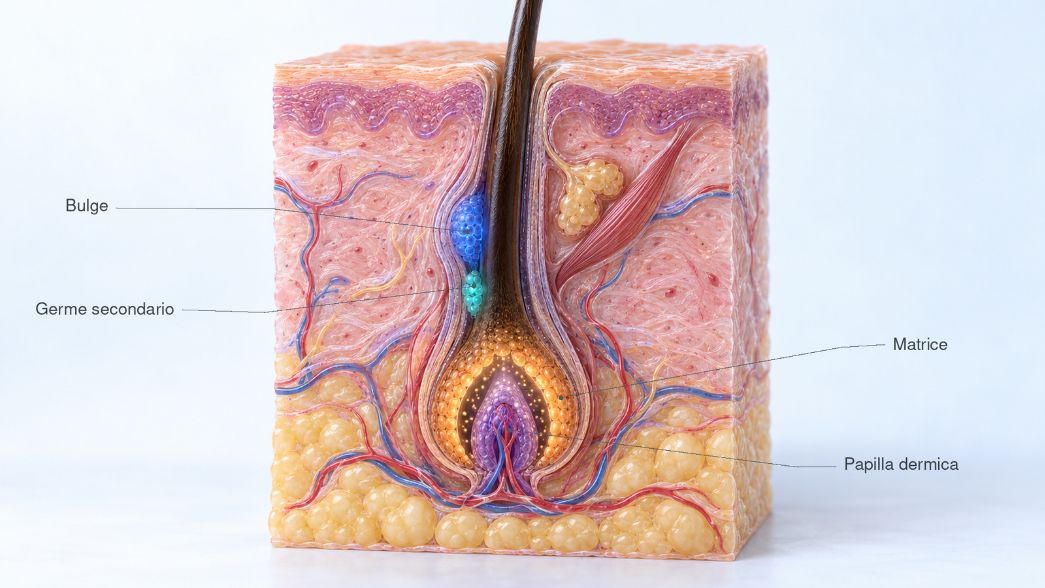
Il bulge, nella guaina epiteliale esterna all’altezza dell’inserzione del muscolo erettore, ospita le cellule staminali epiteliali del follicolo. Durante il telogen sono quiescenti. Sotto il bulge, a contatto con la papilla dermica, si trova il germe secondario, una piccola popolazione di progenitori pronti ad attivarsi. Greco e colleghi hanno mostrato che all’inizio dell’anagen la segnalazione Wnt/β-catenina compare prima nel germe secondario, che inizia a proliferare, e solo in un secondo tempo nel bulge5. La vicinanza fisica tra germe secondario e papilla dermica spiega perché sia il primo compartimento a rispondere.
La matrice e la linea del fusto
Nel bulbo in anagen le cellule della matrice proliferano attorno alla papilla dermica e si differenziano nelle linee della guaina epiteliale interna e del fusto. Nelle cellule destinate a diventare corteccia del fusto la β-catenina è presente nel nucleo insieme al fattore di trascrizione LEF1, e regola l’espressione dei geni delle cheratine del pelo. La via Wnt non serve quindi solo ad avviare l’anagen, ma anche a orientare le cellule verso la produzione del fusto.
La papilla dermica
La papilla dermica è il centro di controllo induttivo del follicolo. Le sue cellule ricevono segnali Wnt dall’epitelio e, a loro volta, producono fattori che stimolano la matrice. In coltura le cellule della papilla perdono rapidamente la capacità di indurre nuovi follicoli; Kishimoto e colleghi hanno dimostrato che specifici ligandi Wnt, e non Sonic hedgehog, mantengono questa capacità3.
| Compartimento | Fase | Ruolo della via Wnt | Fonte |
|---|---|---|---|
| Germe secondario | Telogen-anagen | Prima attivazione e proliferazione all’inizio dell’anagen | Greco 20095 |
| Bulge | Inizio anagen | Attivazione delle cellule staminali e scelta del destino follicolare | Huelsken 20012; Greco 20095 |
| Matrice e precorteccia | Anagen | Differenziazione verso il fusto, insieme a LEF1 | Stenn 20011 |
| Papilla dermica | Anagen | Mantenimento dell’attività induttiva e della proliferazione della matrice | Kishimoto 20003; Enshell-Seijffers 20104 |
| Macroambiente dermico | Telogen | Contrastata dai segnali BMP nella fase refrattaria | Plikus 20086 |
3.Dinamica molecolare e pathway di segnalazione
La via canonica
In assenza di segnale, la β-catenina citoplasmatica viene catturata da un complesso di distruzione formato da Axin, APC e dalle chinasi CK1 e GSK-3β, che la fosforilano e la indirizzano alla degradazione nel proteasoma. Quando un ligando Wnt si lega al recettore Frizzled e al co-recettore LRP5 o LRP6, la proteina Dishevelled inattiva il complesso di distruzione. La β-catenina si accumula, entra nel nucleo e si associa ai fattori di trascrizione TCF/LEF, attivando i geni bersaglio. Tra questi vi sono AXIN2 e LEF1, che fungono da marcatori dell’attività della via, e geni legati alla proliferazione come MYC e la ciclina D11.
Gli inibitori endogeni
La via è regolata da inibitori secreti che agiscono a livelli diversi. DKK-1 si lega a LRP5/6 e impedisce la formazione del complesso recettoriale. Le proteine SFRP, come SFRP1, sequestrano i ligandi Wnt prima che raggiungano il recettore. Hawkshaw e colleghi hanno mostrato che nel follicolo umano SFRP1 è prodotto soprattutto dalla papilla dermica e regola l’attività della β-catenina nel bulbo9. L’equilibrio tra ligandi e inibitori, più che la sola quantità di Wnt, determina il livello di segnalazione.
Il circuito tra epitelio e papilla
La via Wnt collega i due compartimenti del follicolo in un circuito reciproco. Enshell-Seijffers e colleghi hanno inattivato il gene della β-catenina solo nella papilla dermica di follicoli già formati: la proliferazione dei progenitori della matrice si è ridotta drasticamente, il catagen è iniziato in anticipo e il follicolo non è più stato in grado di rigenerarsi dalle cellule staminali. La β-catenina della papilla regola a sua volta la produzione di fattori come FGF e IGF, che mediano l’effetto induttivo sulla matrice4. L’anagen si mantiene quindi finché il dialogo tra papilla e matrice resta attivo.
Interazione con BMP e androgeni
Durante il telogen la via Wnt è contrastata dai segnali BMP provenienti dal derma e dal tessuto adiposo. Plikus e colleghi hanno descritto un telogen refrattario, in cui l’elevata segnalazione BMP impedisce l’attivazione, e un telogen competente, in cui il calo di BMP permette alla via Wnt di avviare l’anagen6. Gli androgeni agiscono sullo stesso equilibrio: nelle cellule della papilla dei follicoli predisposti aumentano DKK-1 e riducono l’attività della β-catenina7,8.
4.Fisiopatologia e correlazioni cliniche
Alopecia androgenetica
Kwack e colleghi hanno dimostrato che il DHT induce DKK-1 nelle cellule della papilla dermica prelevate da cuoio capelluto calvo, e che DKK-1 provoca apoptosi dei cheratinociti follicolari7. Leirós e colleghi hanno osservato che gli androgeni riducono, attraverso l’inibizione della via Wnt canonica, la capacità delle cellule della papilla di pazienti con alopecia androgenetica di indurre la differenziazione delle cellule staminali follicolari; la riattivazione della via Wnt ripristinava questa capacità8. Questi dati, ottenuti in vitro, sono coerenti con l’accorciamento dell’anagen e con la miniaturizzazione osservati nella clinica. Non spiegano tutto il fenomeno: altri mediatori, come TGF-β1 e la prostaglandina D2, contribuiscono allo stesso risultato, come descritto nell’articolo pillar 02.01.
Attivazione eccessiva e tumori
La via Wnt ha anche un lato pericoloso. Nei topi transgenici che esprimono una β-catenina stabilizzata compaiono nuovi follicoli nella cute adulta e tumori simili al pilomatricoma. Chan e colleghi hanno trovato mutazioni attivanti del gene della β-catenina in almeno il 75% dei pilomatricomi umani, tumori benigni che originano dalle cellule della matrice10. Il dato non riguarda direttamente le terapie, ma indica che la stimolazione cronica e non regolata della via nel follicolo comporta un rischio biologico reale, che ogni strategia terapeutica deve considerare.
Perdita del follicolo
Nel modello di Huelsken e colleghi, quando la β-catenina viene eliminata dopo la formazione dei follicoli, il pelo si perde completamente dopo il primo ciclo e le cellule staminali assumono un destino epidermico anziché follicolare2. L’esperimento mostra che la via Wnt non regola solo la durata dell’anagen, ma la capacità stessa del follicolo di rigenerarsi a ogni ciclo.
5.Protocolli chirurgici e impatto sulla microchirurgia FUE
Il trapianto sposta un’unità funzionale, non solo un fusto. Perché un graft torni a crescere nella sede ricevente, devono sopravvivere i due compartimenti che dialogano attraverso la via Wnt: la papilla dermica, con il bulbo che la circonda, e le cellule staminali del bulge e del germe secondario. Le conseguenze pratiche riguardano tutte le fasi della procedura.
- Preservare la papilla nel prelievo. Una transezione nella parte inferiore del follicolo separa la matrice dalla papilla e interrompe il circuito che sostiene l’anagen4. Profondità e allineamento del punch vanno calibrati per estrarre il follicolo intero.
- Proteggere il bulge. Le cellule staminali del bulge sono la riserva da cui riparte ogni ciclo2,5. Le pinze vanno applicate sul tessuto perifollicolare, non sul terzo superiore del follicolo.
- Conservare il manicotto perifollicolare. Derma e grasso attorno al follicolo contengono parte del macroambiente che regola l’equilibrio tra Wnt e BMP6, oltre a proteggere il graft dalla disidratazione.
- Spiegare la cronologia della ricrescita. Dopo l’impianto la maggior parte dei graft perde il fusto ed entra in una fase di riposo; la ricrescita richiede la riattivazione delle cellule staminali e un nuovo anagen, che si rende visibile dopo alcuni mesi.
I determinanti della sopravvivenza del graft sono descritti nell’articolo e la tecnica di prelievo nell’articolo.
6.Medicina rigenerativa e trattamenti adiuvanti
Strategie mirate alla via Wnt
La via Wnt è uno dei bersagli più studiati per nuovi trattamenti dell’alopecia. Hawkshaw e colleghi sono partiti da un’osservazione clinica, l’ipertricosi indotta dalla ciclosporina A, e hanno scoperto che il farmaco riduce SFRP1 nella papilla dermica di follicoli umani in coltura. Il blocco di SFRP1 con la molecola WAY-316606 ha aumentato la produzione del fusto e ridotto l’ingresso spontaneo in catagen9. Il vantaggio teorico di questo approccio è che amplifica solo i segnali Wnt già presenti nel follicolo, invece di attivare la via in modo indiscriminato; i dati sono però limitati alla coltura d’organo e non esistono ancora studi clinici pubblicati.
Altre molecole che modulano la via Wnt sono state studiate nell’alopecia androgenetica, ma nessuna è oggi autorizzata per questa indicazione. Le terapie approvate agiscono su altri bersagli, come descritto nell’articolo pillar 09.01.
Bioingegneria e clonazione follicolare
La perdita della capacità induttiva delle cellule della papilla in coltura è il principale ostacolo alla clonazione follicolare. I ligandi Wnt mantengono questa capacità3, ma una volta persa non è sufficiente a ripristinarla. Per questo le strategie attuali combinano segnali Wnt con colture tridimensionali che riproducono l’ambiente della papilla. Il tema è trattato negli articoli 10.15 e 10.16.
Trattamenti già in uso
Per il plasma ricco di piastrine e altri trattamenti rigenerativi è stata proposta un’azione sulla via Wnt, sulla base di studi in vitro. Il legame tra questi meccanismi e il risultato clinico non è dimostrato, e i dati clinici vanno valutati per quello che mostrano direttamente, come discusso negli articoli 09.09 e 09.10.
7.Gestione del rischio e limiti
- Rischio oncologico teorico. L’attivazione costitutiva della β-catenina è la causa principale del pilomatricoma10, e nel topo produce follicoli ectopici e tumori. Qualunque terapia che attivi la via Wnt in modo prolungato richiede dati di sicurezza a lungo termine.
- Trasferibilità dal topo all’uomo. Gran parte delle evidenze deriva da modelli murini genetici, in cui i follicoli ciclano in modo sincrono. Nel follicolo umano molti meccanismi sono confermati in coltura d’organo, che però non riproduce l’organismo intero1.
- Dati in vitro e clinica. Un effetto sulla β-catenina in cellule coltivate non dimostra un beneficio clinico. Prodotti presentati come attivatori della via Wnt vanno valutati sulla base di studi clinici controllati.
- Trauma chirurgico. La lesione della papilla o del bulge durante il prelievo interrompe il circuito che sostiene la crescita: è un danno biologico, non solo meccanico.
8.Tips & Tricks clinici dell’équipe medica
- Pensare al graft come a un’unità di segnalazione. Papilla, matrice e bulge devono arrivare insieme nella sede ricevente.
- Controllare i graft al microscopio. Un bulbo assente o una papilla separata indicano una transezione da correggere subito nella tecnica di prelievo.
- Diffidare delle promesse molecolari. Al paziente che chiede di prodotti “che attivano le staminali” va spiegato che nessuna terapia mirata alla via Wnt è oggi approvata.
- Usare la biologia per spiegare i tempi. La caduta dei fusti trapiantati e la ricrescita dopo mesi sono più facili da accettare quando il paziente capisce che il follicolo deve avviare un nuovo ciclo.
— Impostazione metodologica dell’équipe di Clinica Pallaoro, Padova
9.Discussione critica e conclusioni
La via Wnt/β-catenina è il collegamento meglio documentato tra le cellule staminali del follicolo, la papilla dermica e la decisione di crescere. I modelli genetici hanno dimostrato che è necessaria per formare il follicolo, per rigenerarlo a ogni ciclo e per mantenere l’anagen2,4,5. Gli studi su cellule e follicoli umani indicano che gli androgeni la inibiscono nella papilla dermica dei follicoli predisposti7,8, offrendo una spiegazione molecolare parziale dell’alopecia androgenetica.
Il passaggio dalla biologia alla terapia resta difficile. La via Wnt è troppo importante e troppo diffusa nell’organismo per essere attivata senza controllo, e il pilomatricoma ricorda che nel follicolo stesso l’eccesso di β-catenina ha conseguenze tumorali10. Le strategie più promettenti cercano di modulare gli inibitori locali, come SFRP1, invece di attivare direttamente la via9. Per il chirurgo, la lezione più immediata è un’altra: la crescita del graft dipende dalla conservazione di un dialogo cellulare che il prelievo e la manipolazione possono interrompere.
10.Bibliografia scientifica annotata
- Stenn KS, Paus R. Controls of hair follicle cycling. Physiol Rev. 2001;81(1):449-494. PubMedRevisione di riferimento sui segnali che controllano il ciclo follicolare, compresa la via Wnt.
- Huelsken J, Vogel R, Erdmann B, Cotsarelis G, Birchmeier W. β-Catenin controls hair follicle morphogenesis and stem cell differentiation in the skin. Cell. 2001;105(4):533-545. DOISenza β-catenina non si formano follicoli e, nel follicolo adulto, il pelo si perde dopo il primo ciclo.
- Kishimoto J, Burgeson RE, Morgan BA. Wnt signaling maintains the hair-inducing activity of the dermal papilla. Genes Dev. 2000;14(10):1181-1185. PMCSpecifici ligandi Wnt mantengono la capacità induttiva delle cellule della papilla dermica in coltura.
- Enshell-Seijffers D, Lindon C, Kashiwagi M, Morgan BA. β-catenin activity in the dermal papilla regulates morphogenesis and regeneration of hair. Dev Cell. 2010;18(4):633-642. PMCLa β-catenina nella papilla è necessaria per la proliferazione della matrice e per la rigenerazione del follicolo.
- Greco V, Chen T, Rendl M, et al. A two-step mechanism for stem cell activation during hair regeneration. Cell Stem Cell. 2009;4(2):155-169. PMCAttivazione sequenziale del germe secondario e del bulge all’inizio dell’anagen.
- Plikus MV, Mayer JA, de la Cruz D, et al. Cyclic dermal BMP signalling regulates stem cell activation during hair regeneration. Nature. 2008;451(7176):340-344. PMCTelogen refrattario e competente regolati dall’equilibrio tra segnali BMP e attivazione.
- Kwack MH, Sung YK, Chung EJ, et al. Dihydrotestosterone-inducible dickkopf 1 from balding dermal papilla cells causes apoptosis in follicular keratinocytes. J Invest Dermatol. 2008;128(2):262-269. Kyungpook National UniversityDKK-1 indotto dal DHT nella papilla dermica calva come segnale inibitorio.
- Leirós GJ, Attorresi AI, Balañá ME. Hair follicle stem cell differentiation is inhibited through cross-talk between Wnt/β-catenin and androgen signalling in dermal papilla cells from patients with androgenetic alopecia. Br J Dermatol. 2012;166(5):1035-1042. CONICETGli androgeni inibiscono la via Wnt canonica nelle cellule della papilla e la loro capacità di indurre differenziazione.
- Hawkshaw NJ, Hardman JA, Haslam IS, et al. Identifying novel strategies for treating human hair loss disorders: cyclosporine A suppresses the Wnt inhibitor, SFRP1, in the dermal papilla of human scalp hair follicles. PLoS Biol. 2018;16(5):e2003705. PMCSFRP1 come regolatore della β-catenina nel follicolo umano e WAY-316606 come promotore della crescita ex vivo.
- Chan EF, Gat U, McNiff JM, Fuchs E. A common human skin tumour is caused by activating mutations in beta-catenin. Nat Genet. 1999;21(4):410-413. PubMedMutazioni attivanti della β-catenina in almeno il 75% dei pilomatricomi, tumori derivati dalla matrice.
Contenuto destinato a professionisti sanitari a scopo di aggiornamento scientifico. Non sostituisce la valutazione clinica individuale. © Clinica Pallaoro — trapiantocapelli.com